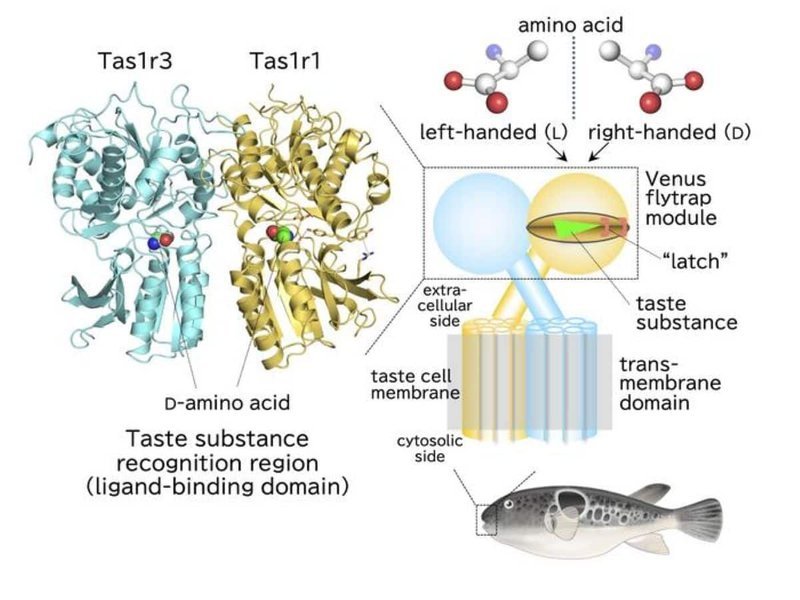
日本大阪大学的研究人员首次成功解析了河豚(Takifugu rubripes)鲜味受体直系同源物的三维晶体结构,揭示了一种独特的分子“门闩”机制。这一突破性发现阐明了该受体如何能够同时识别通常呈鲜味的L-氨基酸和通常呈甜味的D-氨基酸,颠覆了传统味觉感知的规则。该结构性发现揭示了感觉受体如何通过进化形成灵活的内部连接,从而拓宽味觉感知范围,为设计下一代风味化合物和特种饲料开辟了新途径。
- 前所未有的立体化学柔性:与哺乳动物味觉受体严格区分镜像异构体不同,河豚的Tas1r1/Tas1r3受体能够结合并响应L-氨基酸(通常呈鲜味)和D-氨基酸(通常呈甜味)。
- 独特的分子“门闩”机制:结构分析表明,即使分子配体与结合位点不完美匹配,受体亚结构域间的相互作用也能将受体蛤壳状的结合裂隙牢牢关闭,从而稳定其活性信号状态。
- 饮食驱动的进化适应:这种独特的适应性被认为是源于河豚的日常饮食,它们摄入的软体动物和甲壳类动物天然富含高浓度的D-氨基酸。
动物如何感知食物的化学成分
味觉是生物体的“哨兵”,它能提醒脊椎动物摄入富含卡路里的救命营养物质,同时警示有毒化合物。位于这一感觉系统分子前沿的是味觉受体1型(TAS1R)家族,这是一类C型G蛋白偶联受体(GPCRs),负责在不同物种中检测糖类、氨基酸和核苷酸。
在人类和其他哺乳动物中,味觉识别以其严格的对映选择性而闻名:鲜味受体(TAS1R1/TAS1R3)选择性识别L-氨基酸,而甜味受体(TAS1R2/TAS1R3)则检测糖类和D-氨基酸。然而,由于体外纯化和稳定这些脆弱的受体复合物一直困难重重,控制味觉受体识别目标配体的结构机制在很大程度上仍是一个未解之谜。
如今,由日本大阪大学领导的一个研究团队通过测定河豚(Takifugu rubripes)Tas1r1/Tas1r3配体结合域的三维晶体结构,破解了这一结构谜团。该团队发表在《美国国家科学院院刊》(Proceedings of the National Academy of Sciences, PNAS)上的研究成果,揭示了令人惊讶的立体化学柔性,颠覆了经典的味觉受体特异性模型。
内置“门闩”的分子夹
与其它C型G蛋白偶联受体一样,TAS1R受体具有一个巨大的胞外配体结合域,其构型类似于蛤壳或夹子。通常情况下,匹配的营养物质结合到裂隙内部,导致“夹子”紧密闭合并触发细胞内信号传导。如果分子具有错误的3D形状或镜像手性,夹子将无法锁定闭合,信号级联反应便会保持沉默。
然而,河豚的Tas1r1/Tas1r3受体表现出截然不同的行为。通过晶体学和突变分析,研究人员识别出独特的亚结构域间相互作用,它们充当内部的分子“门闩”。这些“桥梁”即使在与非典型配体相互作用时,也能将结合裂隙牢牢固定住,从而在广泛的氨基酸谱系中维持受体的活性构象。
资深作者Atsuko Yamashita解释说:“通常情况下,受体无法结合形状不正确的分子。发现Tas1r1/Tas1r3受体结构如何像一个门闩,将L-或D-氨基酸分子固定在适当位置,是理解受体如何进化以变得更具柔性的一个激动人心的突破。”
海洋饮食驱动的进化
这种立体化学上的“不挑剔”似乎是一种直接由动物生态位塑造的进化适应性。
Yamashita指出:“我们相信河豚的饮食驱动了这种分子进化。它们摄入了大量的软体动物和甲壳类动物,这些食物含有高浓度的D-氨基酸。通常,TAS1R被认为能够区分L-和D-氨基酸,并且只感知其中一种。而同时感知两种形式的能力可能有助于河豚在其食物中检测更广泛的鲜味氨基酸。”
通过获得能够将构象平衡向活性状态转移的分子内相互作用,河豚味觉受体在无需全新受体基因家族的情况下,扩展了其“美食”范围。
从进化生物学到风味工程
揭示Tas1r1/Tas1r3的原子框架,其实际意义远超进化感觉生物学领域。由于脊椎动物味觉受体共享一个保守的结构核心架构,理解分子内“门闩”如何调节配体结合,可以为合理的药物和风味设计提供启发。
食品科学家可以利用这些结构蓝图,为人类营养工程设计新型鲜味增强剂,或配制靶向饲料添加剂,以改善水产养殖和畜牧业中的适口性。
Author: Atsuko Yamashita (Senior Author)
Institution: The University of Osaka