
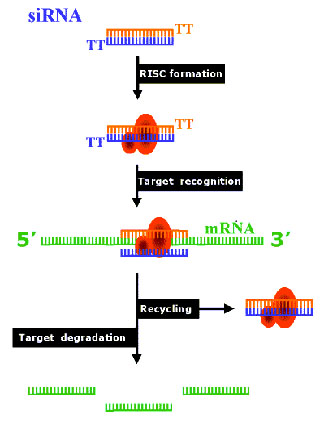
核糖核酸干扰(RNAi)技术是一种基于转录后基因沉默机制的强大基因调控工具,广泛应用于基因功能研究和潜在的基因治疗。最初,转录后基因沉默(PTGS,post-transcriptional gene silencing)被认为仅存在于矮牵牛花等植物中,是一种奇异现象。近年来的研究表明,PTGS普遍存在于动植物体内,参与抗病毒防御和转座子抑制等重要生物过程。
1990年代初,Rich Jorgensen等人在矮牵牛花中观察到“共抑制”现象,即外源基因导入反而抑制了内源性同源基因的表达。随后,线虫研究揭示了双链RNA(dsRNA)诱导的基因沉默机制。Fire和Mello团队通过实验发现,双链RNA比单链反义RNA更有效地引发基因沉默,提出了RNAi的概念,并因此获得诺贝尔奖。
RNAi的分子机制主要包括以下几个步骤:首先,外源导入的双链RNA被Dicer酶切割成21~23个核苷酸的小干扰RNA(siRNA)。Dicer属于特异性核糖核酸酶家族,切割过程依赖ATP。切割后的siRNA具有3'端两个核苷酸的突出末端。随后,siRNA被加载到RNA诱导沉默复合体(RISC)中,RISC利用siRNA的序列特异性识别并切割靶mRNA,导致其降解和基因沉默。该过程高度依赖碱基互补配对,单个碱基的错配即可显著降低沉默效率。
RNAi不仅在基础研究中用于特异性基因功能剔除,也被广泛探索作为基因治疗的新策略。siRNA可通过化学合成或体外转录获得,商业公司如Proligo、Orbigen和Ambion提供多种即用型及标记型siRNA产品以便于实验监测。为了克服siRNA在细胞内的短暂效应,研究者开发了表达siRNA或小发夹RNA(shRNA)的质粒载体,实现持续的基因沉默。
值得注意的是,哺乳动物细胞对长双链RNA(>30nt)存在非特异性免疫反应,导致非特异性RNA降解,而短链siRNA(<30nt)则避免了这一问题,保证了沉默的特异性和安全性。
在siRNA设计方面,通常遵循以下原则:选择以嘌呤(A或G)起始的19~21nt序列,GC含量控制在30%~50%,避免连续的四个相同碱基,排除起始密码子下游50~100nt和终止密码子上游100nt区域以及非编码区,利用BLAST确保序列特异性。实验中常设计1~2个碱基错配的对照序列以验证特异性。
此外,RNAi通路的效应扩增机制也备受关注,可能通过细胞内复制外源dsRNA或siRNA以及RISC复用实现。当前,RNAi技术正不断完善,推动功能基因组学研究的革命,并被视为未来基因治疗的重要方向。